文献解读
贾伟教授团队深耕十年续写猪胆酸家族“前半生”,后半生会开什么花?
提起猪胆酸,很多人会以为它是“猪体内的胆汁酸”。事实上,它并非猪的专属——人体自己就能合成这类胆汁酸,而且在生命早期含量极高。
传统观点认为,人体内的初级胆汁酸只有两种——胆酸(CA)和鹅脱氧胆酸(CDCA)。而近年来,一组以6α-羟基化为特征的胆汁酸被正式确认为人初级胆汁酸的“第三大类”——主角正是猪胆酸(Hyocholic acid, HCA)及其甘氨酸、牛磺酸结合物,以及对应的次级成员猪脱氧胆酸(HDCA)等。
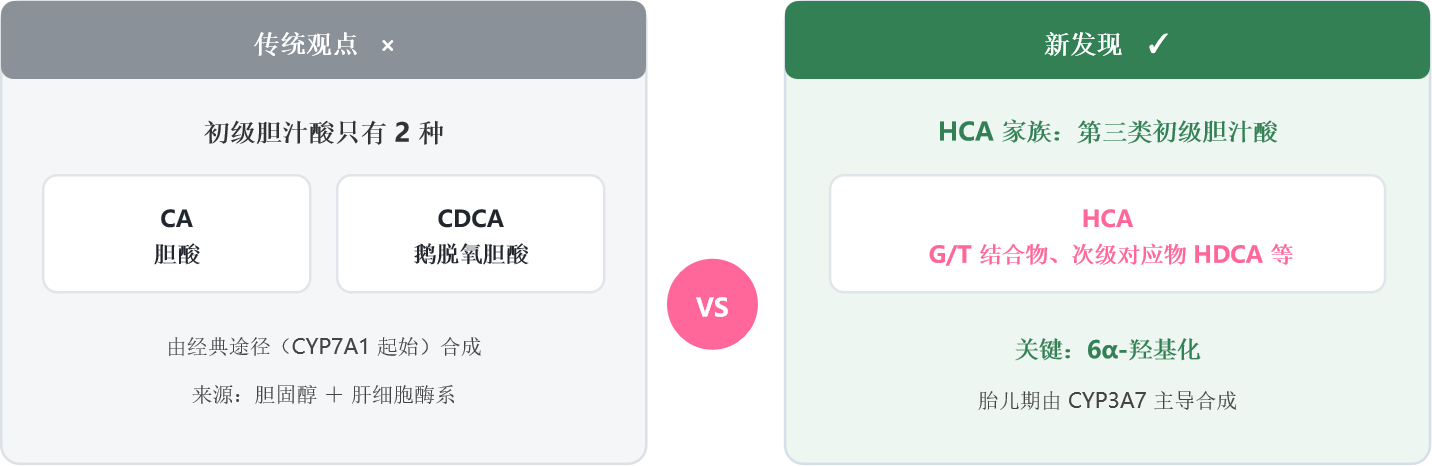
关键差别:HCA是在CA骨架上多了一个6α-羟基
近日,麦特绘谱创始人贾伟教授/上海交通大学附属第六医院郑晓皎团队在Trends in Endocrinology & Metabolism发表Forum文章“Hyocholic acid: a primary bile acid regulating lifespan immunometabolism”,提出HCA是贯穿生命全程的免疫代谢调节轴心:在胎儿与新生儿期,它由胎儿特异性酶CYP3A7主导合成、可占胎便胆汁酸池的50%以上,帮助新生儿建立肠道免疫耐受;进入成年期后丰度虽大幅下降,仍持续调控糖脂代谢与免疫平衡。
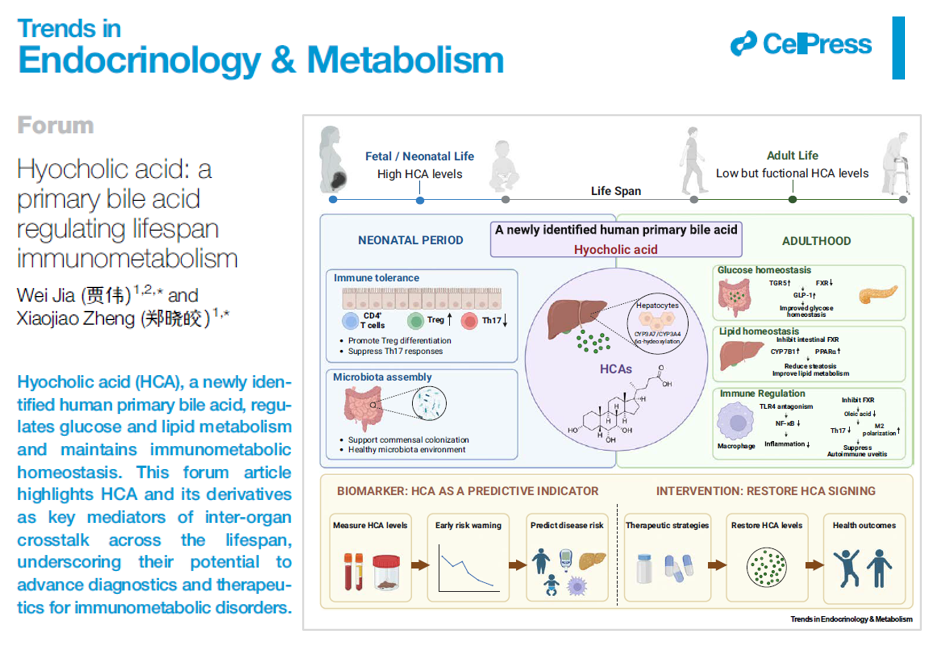
HCA的“前半生”
随发育重塑免疫代谢调控系统
HCA在不同发育阶段具有不同的丰度、来源和作用场景,它像是一套随发育不断重塑的代谢调控系统,却始终与机体的免疫代谢稳态保持联系。
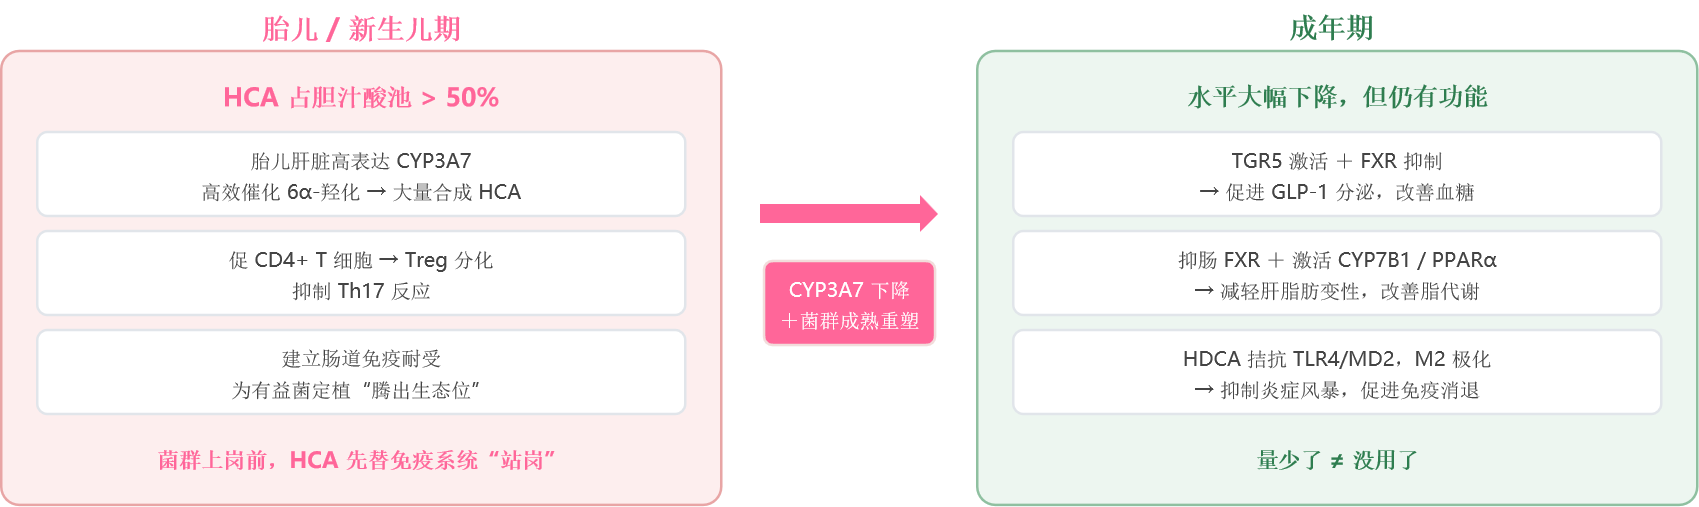
胎儿与新生儿期:HCA是“主力军”
• 胎儿肝脏高表达“胎儿专属”酶CYP3A7,高效催化6α-羟化,把代谢大量导向HCA合成;
• 在新生儿胎粪中,HCA可占胆汁酸池的50%以上;
• 此时肠道尚无菌群定居,HCA是宿主派出的“先头部队”:促Treg、抑Th17,帮新生儿对食物抗原建立免疫耐受,并为有益菌定植“腾出生态位”,引导菌群组装。
在菌群成熟之前,宿主已经用自身的代谢程序搭好了免疫耐受的舞台——先有环境,后有菌群。
成年期:HCA是“低调的守护者”
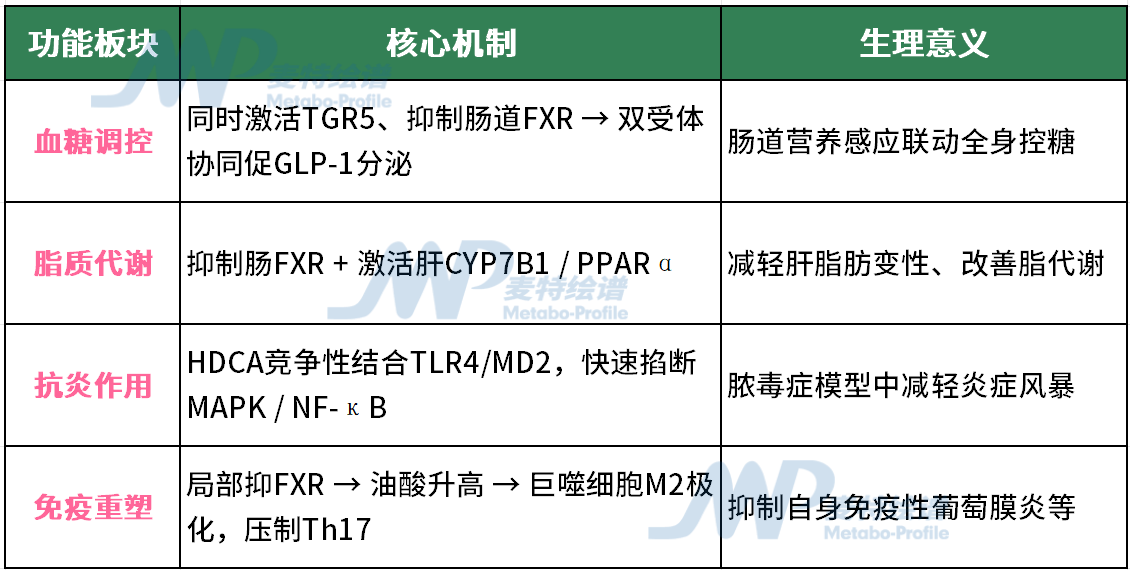
出生后CYP3A7表达回落,菌群逐渐成熟并将HCA转化重塑,成年后循环HCA水平大幅下降。但文章特别强调——量少了 ≠ 没用了。成年期HCA可通过同时激活G蛋白偶联受体5(TGR5)、抑制法尼醇X受体(FXR),促进胰高血糖素样肽-1(GLP-1)合成和分泌;HDCA则可通过肠-肝轴参与脂质代谢调控,并通过TLR4以及脂质代谢-巨噬细胞通路调节炎症和免疫反应。
临床转化
从疾病预警标志物到临床新药
早期预警标志物:肥胖、2型糖尿病、非酒精性脂肪肝患者循环HCA水平一致性降低;纵向研究显示HCA的下降早于临床症状出现——它是“提前报警”的指标。Roux-en-Y胃旁路术(一种减重代谢手术)后HCA回升,且与2型糖尿病(T2D)的持续缓解相关,提示预后价值。
治疗干预:猪胆粉已收入《中国药典》,有长期临床使用基础,毒理学评价支持其安全性;口服HDCA(AHRO-001)已完成轻中度高胆固醇血症人群的随机双盲I期临床;THDCA也有人体给药耐受性数据。
十年磨一剑
贾伟教授团队猪胆酸研究历程
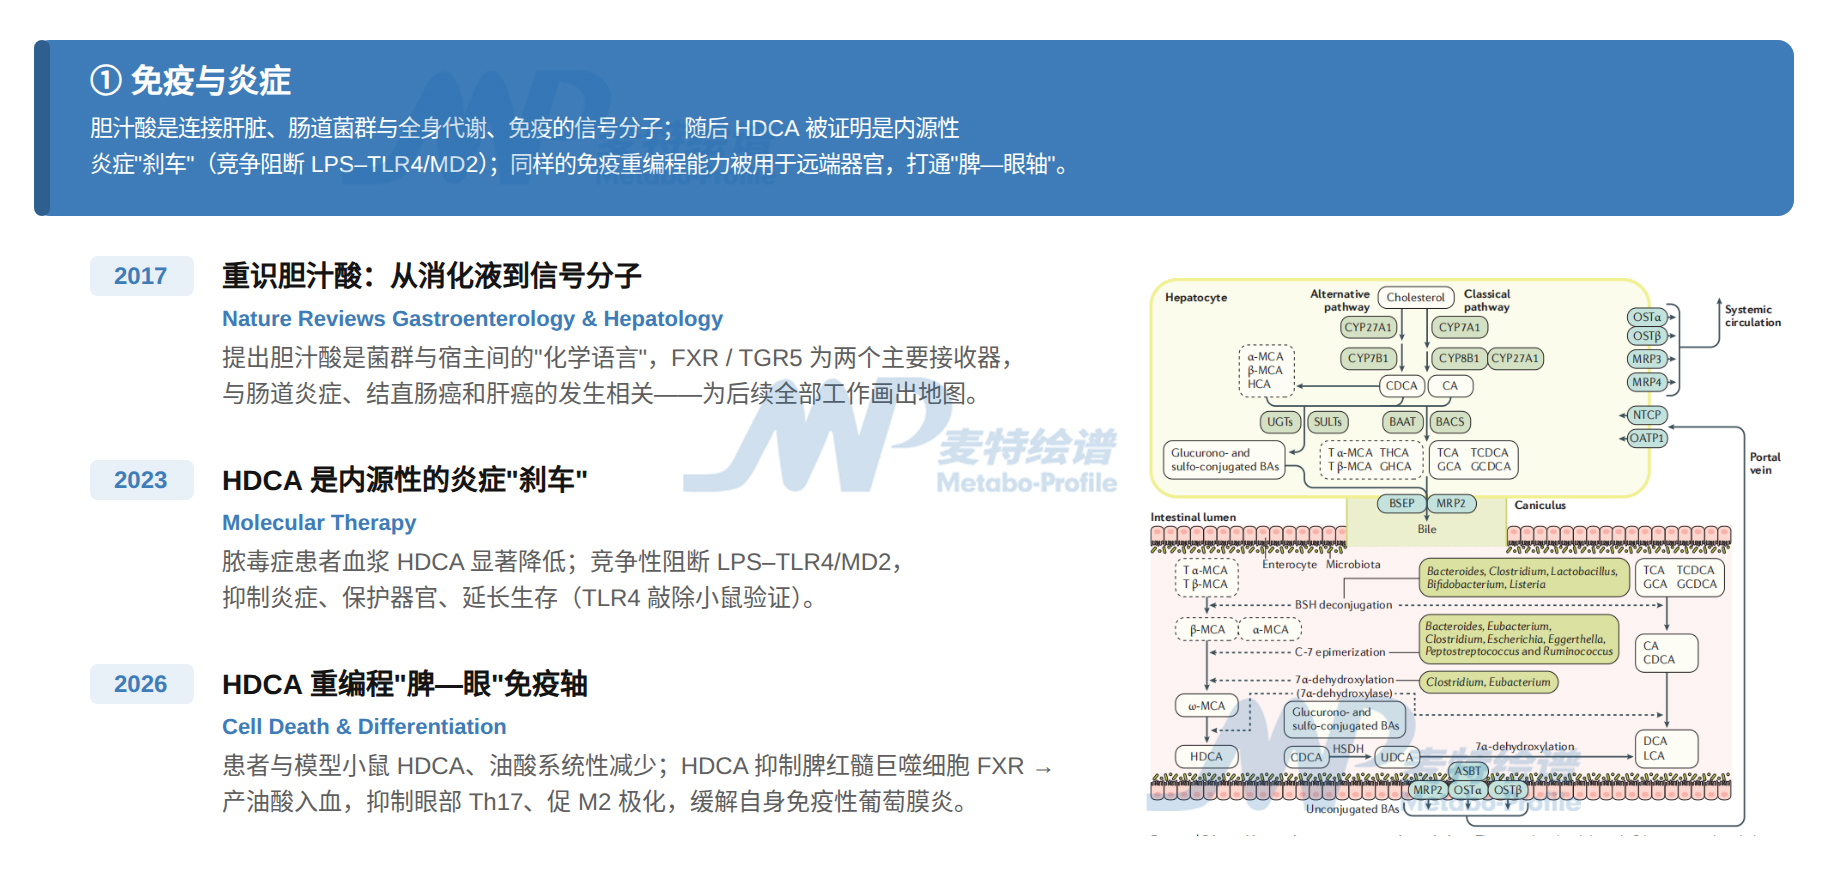
贾伟教授团队在猪胆酸领域深耕近十年,从提出胆汁酸是连接肝脏、肠道菌群与代谢免疫的信号分子起步,逐步构建起覆盖血糖、脂代谢、免疫与新生儿健康的研究体系。
2017年
提出胆汁酸不只是消化液,更是连接肝脏、肠道菌群与全身代谢、免疫的信号分子;
2021年
研究证实猪胆酸经TGR5和FXR双受体机制改善血糖,并揭示其可作为代谢性疾病的新型生物标志物;
2023年
阐明猪脱氧胆酸经肠-肝轴逆转非酒精性脂肪肝、靶向TLR4/MD2复合物抗炎的作用机制;
2026年
研究链延伸至中药转化(猪胆粉)与新生儿免疫,逐步构建起全面的猪胆酸研究版图。
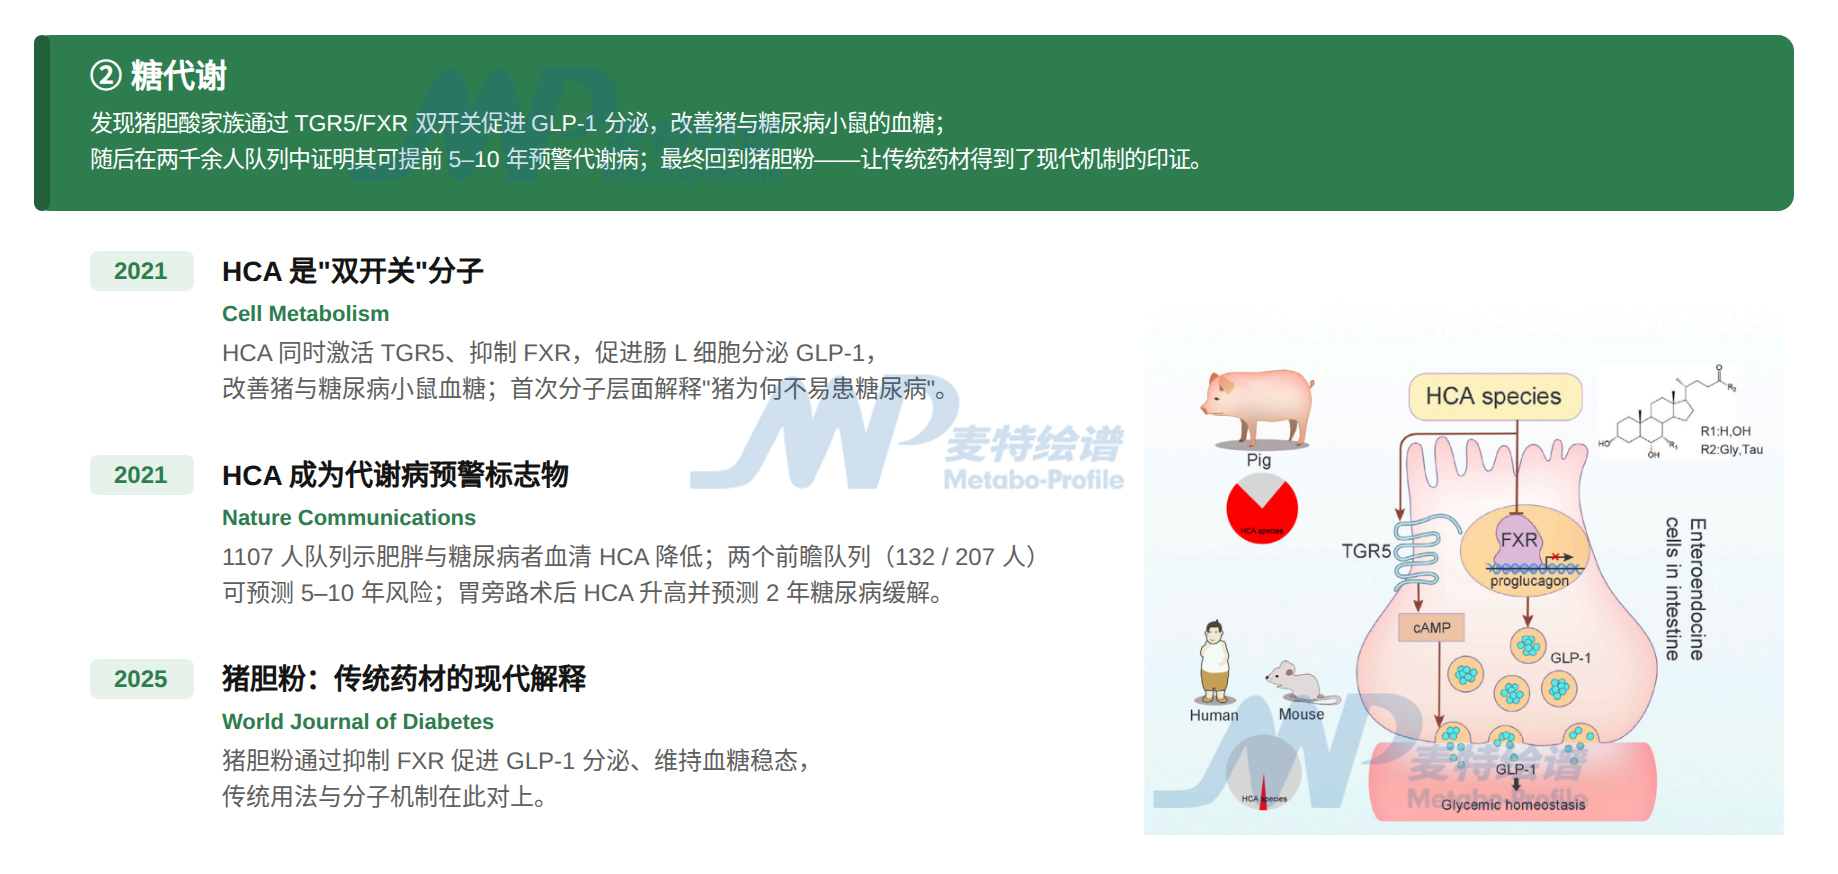
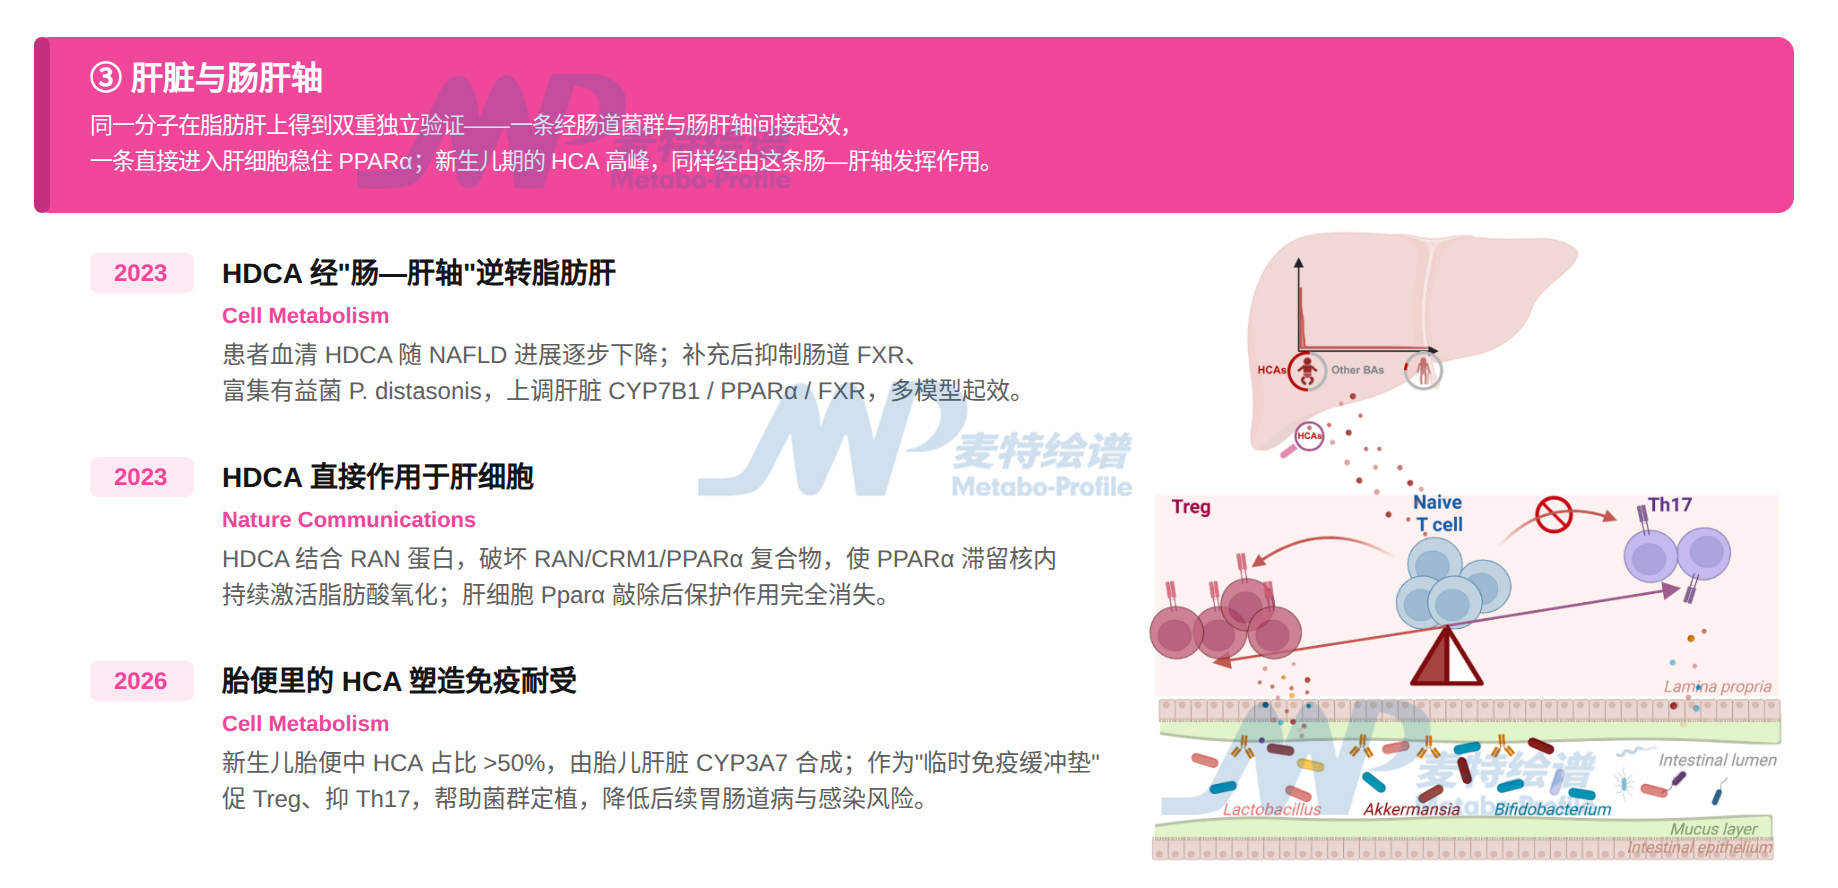
作为初级胆汁酸的“第三大类”,猪胆酸家族的意义远超消化本身:新生儿期,它由CYP3A7主导大量合成,是建立免疫耐受、引导菌群定植的“主力军”;成年后丰度虽骤降,仍通过TGR5/FXR双受体机制调控GLP-1分泌与糖脂代谢,扮演“低调的守护者”。贾伟教授团队十年深耕,从机制阐明、早期预警标志物的发现,到猪胆粉与HDCA的临床推进,正把胆汁酸生物学从传统的消化与成人代谢调控,推进到发育生物学、免疫学和微生态共同交汇的生命历程研究框架——猪胆酸家族的“后半生”,才刚刚开始。
参考文献
1. Xie G, Wang X, Liu P, et al. Bile acid–microbiota crosstalk in gastrointestinal inflammation and carcinogenesis. Nat Rev Gastroenterol Hepatol. 2017;15(2):111–128. doi:10.1038/nrgastro.2017.119
2. Zheng X, Chen T, Jiang R, et al. Hyocholic acid species improve glucose homeostasis through a distinct TGR5 and FXR signaling mechanism. Cell Metab. 2021;33(4):791–803.e7. doi:10.1016/j.cmet.2020.11.017
3. Zheng X, Chen T, Zhao A, et al. Hyocholic acid species as novel biomarkers for metabolic disorders. Nat Commun. 2021;12:1487. doi:10.1038/s41467-021-21744-w
4. Kuang J, Wang J, Li Y, et al. Hyodeoxycholic acid alleviates non-alcoholic fatty liver disease through modulating the gut-liver axis. Cell Metab. 2023;35(10):1752–1766.e8. doi:10.1016/j.cmet.2023.07.011
5. Zhong J, He X, Gao X, et al. Hyodeoxycholic acid ameliorates nonalcoholic fatty liver disease by inhibiting RAN-mediated PPARα nucleus-cytoplasm shuttling. Nat Commun. 2023;14:5451. doi:10.1038/s41467-023-41061-8
6. Li J, Chen Y, Li R, et al. Gut microbial metabolite hyodeoxycholic acid targets the TLR4/MD2 complex to attenuate inflammation and protect against sepsis. Mol Ther. 2023;31(4):1017–1032. doi:10.1016/j.ymthe.2023.01.018
7. Sun YM, Kuang JL, Zhang HH, et al. Pig bile powder maintains blood glucose homeostasis by promoting glucagon-like peptide-1 secretion via inhibiting farnesoid X receptor. World J Diabetes. 2025;16(6):103616. doi:10.4239/wjd.v16.i6.103616
8. Zheng X, Wang J, Sun Y, et al. Hyocholic acids shape neonatal immune tolerance and microbiota assembly. Cell Metab. 2026;38(9). doi:10.1016/j.cmet.2026.04.016
9. Li Y, Zheng W, Ma J, et al. Gut-derived hyodeoxycholate reprograms the spleen–eye immunometabolic axis to suppress autoimmune uveitis. Cell Death Differ. 2026. doi:10.1038/s41418-026-01696-8
10. Jia W, Zheng X. Hyocholic acid: a primary bile acid regulating lifespan immunometabolism. Trends Endocrinol Metab. 2026. doi:10.1016/j.tem.2026.09.016